NAR|Drop-t解析高阶染色质互作,揭示增强子的竞争与合作模式
增强子可以通过远程接触参与启动子的调控。一个启动子往往与多个增强子相联系,但这些增强子是在不同细胞或不同时刻分别接触启动子,还是同时参与同一个复合体?它们之间是竞争还是合作?回答这些问题,需要在两点互作图谱之外解析多位点接触。
Pore-C、HiPore-C等方法通过长读长测序检测高阶互作,但蛋白残留及3C建库中形成的DNA纠缠可能影响长连接产物的完整读取。SPRITE等非连接方法则可以检测更大尺度的核内结构。如何兼顾通量、信息完整性与调控研究所需的空间尺度,仍是高阶互作检测面临的挑战。
2026年11月10日,国家生物信息中心在Nucleic Acids Research发表题为“Microfluidic concatemer sequencing unveils cooperative and competitive enhancer clusters in gene regulation”的研究论文。研究开发了基于微流控的Drop-t技术及配套高阶复合体组装算法,在K562和GM12878细胞中检测高阶染色质互作,并分析了增强子接触模式与基因表达的关系,提出主控型和引导型两类基因调控模式。
3C产物中的DNA纠缠可能保留高阶空间邻近信息
研究者首先注意到,3C高分子量产物在凝胶中的表观大小与实际测序读长不一致。凝胶中的3C产物在10 kb以上,但纳米孔和PacBio测序得到的平均读长分别只有约3–6 kb和1–4 kb。即使HiPore-C改进了蛋白酶消化条件,中位读长仍为5.7 kb,提示还有其他因素影响长连接产物的读取。
为解释这一差异,研究者模拟了3C酶切片段的连接过程。即使连接充分,约80%的模拟产物仍短于2 kb,超过10 kb的线性连接产物只占少数。这提出了一个问题:凝胶中看似很长的DNA,是否也可能由多个相互纠缠的片段组成?
原子力显微镜(AFM)观察为此提供了证据。在相同DNA浓度下,3C产物中可见更复杂的交叉结构,单位DNA长度的交叉点数量显著高于线性质粒和未连接DNA片段,且不同实验批次均可观察到这一差异。分子动力学模拟也显示,DNA片段能够在连接过程中形成纠缠。
研究者进一步在模拟凝胶体系中比较了纠缠DNA与等质量游离线性DNA的迁移行为。在10次独立模拟中,纠缠DNA的迁移显著更慢。这说明,多个片段构成的纠缠复合体可能更难穿过凝胶筛分网络,因而在凝胶中呈现较大的表观分子量。纠缠由此为“凝胶条带较大、测序读长较短”的现象提供了一种可能解释。
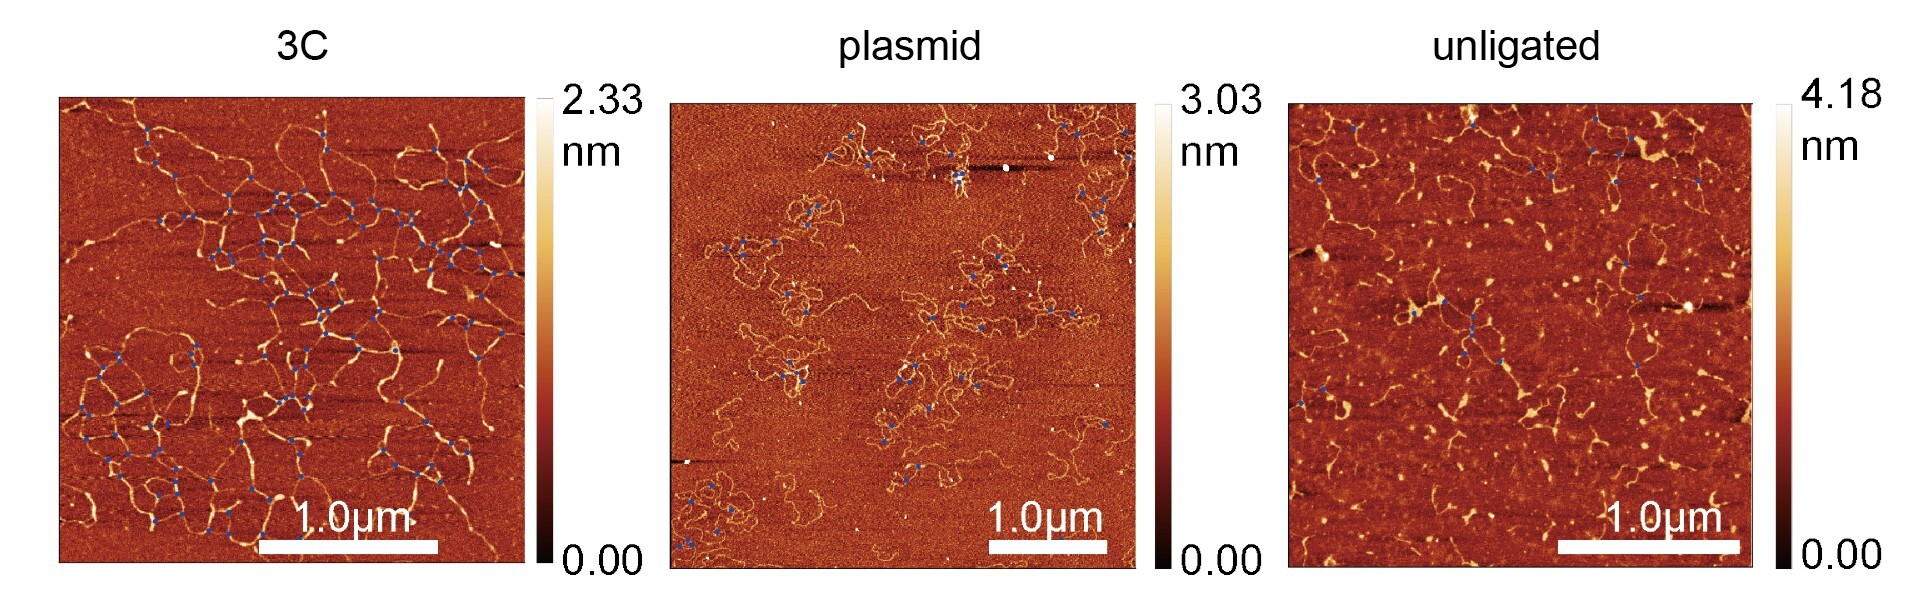
图1 3C连接产物中的DNA纠缠(原论文Figure 1C)。从左至右依次为3C长连接产物、线性质粒和未连接DNA的AFM图像,DNA浓度均为1 ng/μL,交叉位置以蓝点标记。
这些观察提出了新的技术需求:如何在不依赖连续长读段的情况下,获取纠缠产物中保留的高阶空间邻近信息?
Drop-t结合微流控与组装算法,实现高阶染色质互作解析
研究者开发了基于微流控的Drop-t技术。该方法以3C高分子量产物为起点,利用微流控平台将DNA分配至带有条码的液滴,经随机扩增后进行双端二代测序。相互纠缠的DNA分子有机会共同进入液滴并获得相同条码,因此即使未能连续读取整条长分子,也能通过条码关联其部分组成片段,恢复其中保留的高阶空间邻近信息。这一设计将高阶信息的获取从连续长分子读取转向液滴内的片段关联。研究在K562和GM12878中分别进行了两个技术重复,用于高阶互作复合体组装和下游分析。
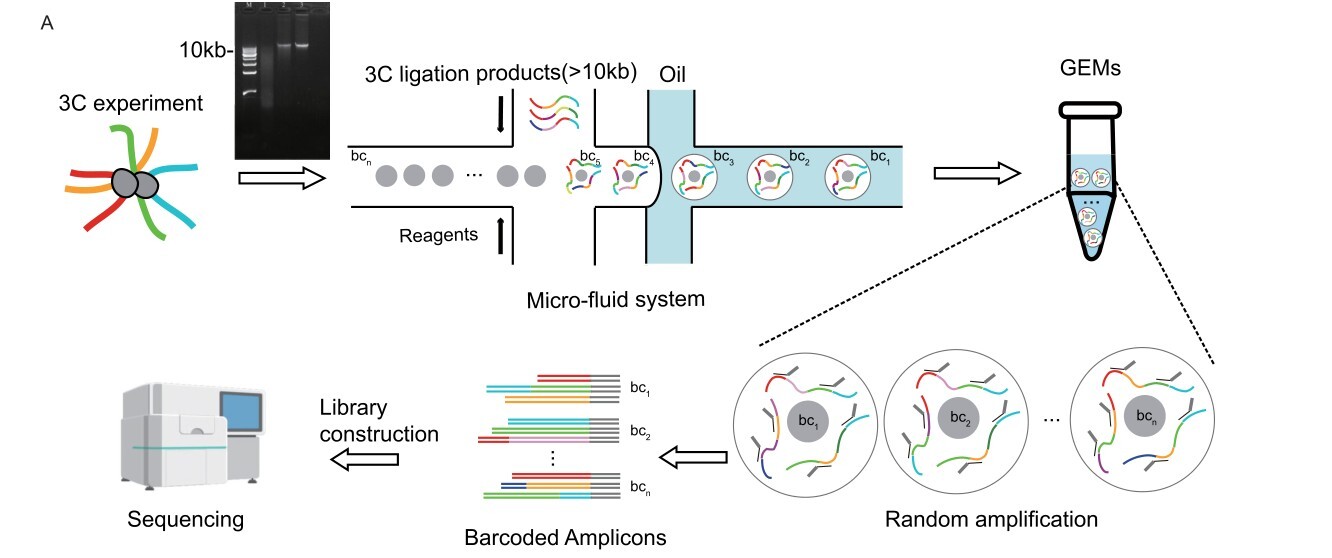
图2 Drop-t技术流程(原论文Figure 2A)。3C高分子量产物经液滴分配、条码标记及扩增后,使用短读长测序读取。液滴内的片段组成随后由配套算法解析。
实验捕获之外,Drop-t还需要解决计算上的难题:一个液滴可能包含多个复合体,而有限的测序深度又使各复合体的连接证据不完整。研究者因此开发了配套组装算法,以限制性酶切片段为节点、观测到的连接为边,利用跨液滴汇总的连接信息补全单个液滴中缺失的联系,逐步重建Drop-t连接型高阶染色质复合体(d-LHCC)。
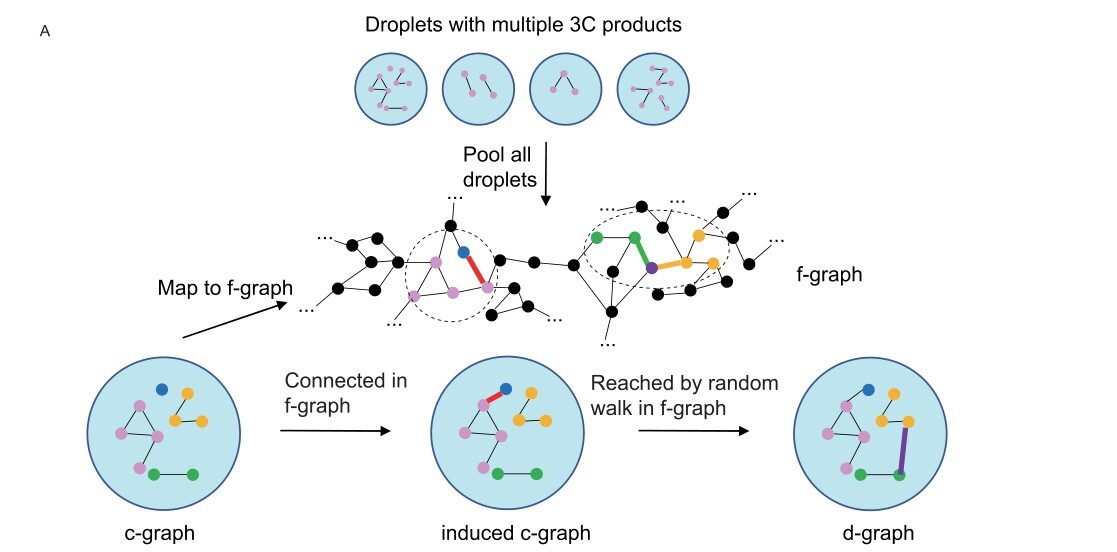
图3 d-LHCC组装算法(原论文Figure 3A)。算法以液滴内的连接证据为起点,利用跨液滴汇总的连接信息辅助重建高阶复合体。
多种独立证据支持了组装结果的合理性。Drop-t技术重复之间一致性较高,两点互作图谱与Hi-C相似;组装得到的高阶复合体也与Pore-C、C-walks和HiPore-C呈现相似的片段组成特征。染色质示踪成像进一步支持,d-LHCC内的片段在空间中更为接近。与SPRITE相比,Drop-t的基因—增强子接触更多来自小型复合体,体现了不同技术的捕获偏好,也为分析局部调控关系提供了更集中的信息。
非特异性增强子—启动子接触可能干扰基因表达
在K562和GM12878中,Drop-t分别检出约1650万和1030万个增强子—启动子互作事件(EPI),但EPI数量与表达水平仅呈弱相关。这些观察提示,大量EPI可能反映短暂或非特异性的接触。
研究进一步发现,Drop-t与SPRITE共同检出的跨染色体EPI很少,且绝大多数在各自数据中仅检出一次(singleton)。据此,研究将singleton作为潜在非特异性接触的指标。GM12878的d-LHCC中,约六成EPI属于singleton,提示这类接触广泛存在。
在控制EPI数量等因素后,非特异性接触比例较高的基因,往往表达水平较低、表达噪声较高。这些关联提示,非特异性接触可能与特异性接触形成竞争或干扰,影响基因表达的强度和稳定性。
特异性增强子的竞争与合作对应两类基因调控模式
特异性增强子之间是否也存在竞争与合作?研究以EPI熵(EPIE)描述非singleton接触分布的分散程度,以高阶EPI比例(POH)衡量一个基因的EPI中,参与该基因与至少两个增强子共同出现的复合体的比例。在控制接触数量及非特异性接触比例等因素后,研究者识别出了两类调控模式:
特异性EPI较少的主控型基因中,EPIE较高往往与较低的表达水平、较高的表达噪声相关,提示特异性增强子之间的竞争可能削弱转录输出及表达稳定性。特异性EPI较多的引导型基因则表现出不同特征:POH越高,表达水平往往越高、表达噪声越低,提示多个特异性增强子的合作有助于维持较强且稳定的转录输出。
两类基因的局部染色质组织也有所不同。主控型基因的启动子距最近增强子更远,跨TAD互作更多;引导型基因的增强子则更倾向于与目标基因位于同一TAD。
此外,两类基因的启动子富集不同的转录因子结合基序(motif),且引导型启动子的基序平均个数更多。研究据此提出,这些潜在结合位点可能为增强子提供分子“停靠位点”:位点有限时更容易发生竞争,位点丰富时则有利于合作。
综合这些发现,研究提出了高阶染色质互作背景下增强子竞争与合作的调控模型:非特异性接触可能干扰特异性接触,而多个特异性增强子的合作可能促进表达并维持其稳定性。最近增强子的主导程度与启动子可用结合位点之间的平衡,可能影响竞争或合作模式的形成,为理解远端调控元件如何共同调节表达强度和稳定性提供了概念框架。
国家生物信息中心陈启文与郑时奇为共同第一作者,国家生物信息中心张治华、史悦和华南理工大学李飞飞为共同通讯作者。
研究团队来自国家生物信息中心、中国科学院大学、华南理工大学、河北工业大学、重庆医科大学和南方科技大学。项目得到国家自然基金委,中国科学院先导专项等支持。


